


生科院周冕团队在Cell子刊发文揭示病原效应子破坏生物钟调控植物免疫的分子机制
生物钟是植物为适应地球自转产生的光照和温度的昼夜节律变化而进化产生内源性的计时系统,其协调植物众多的生长发育过程和对逆境的响应。病原菌的入侵会触发防御相关的基因的高表达。然而,抗病基因的持续高表达是一个高耗能的过程,会对植物的生长发育造成不利影响。那么植物是如何精准调控抗病基因表达,实现生长与防御平衡的?策略之一是利用生物钟对免疫反应进行时序调控,使植物免疫基因在一天中的特定时间高表达(即生物钟门控免疫),从而实现对有限能量的合理分配和利用。然而病原菌是否会突破生物钟构筑的免疫防线?这一关键科学问题亟待解答。
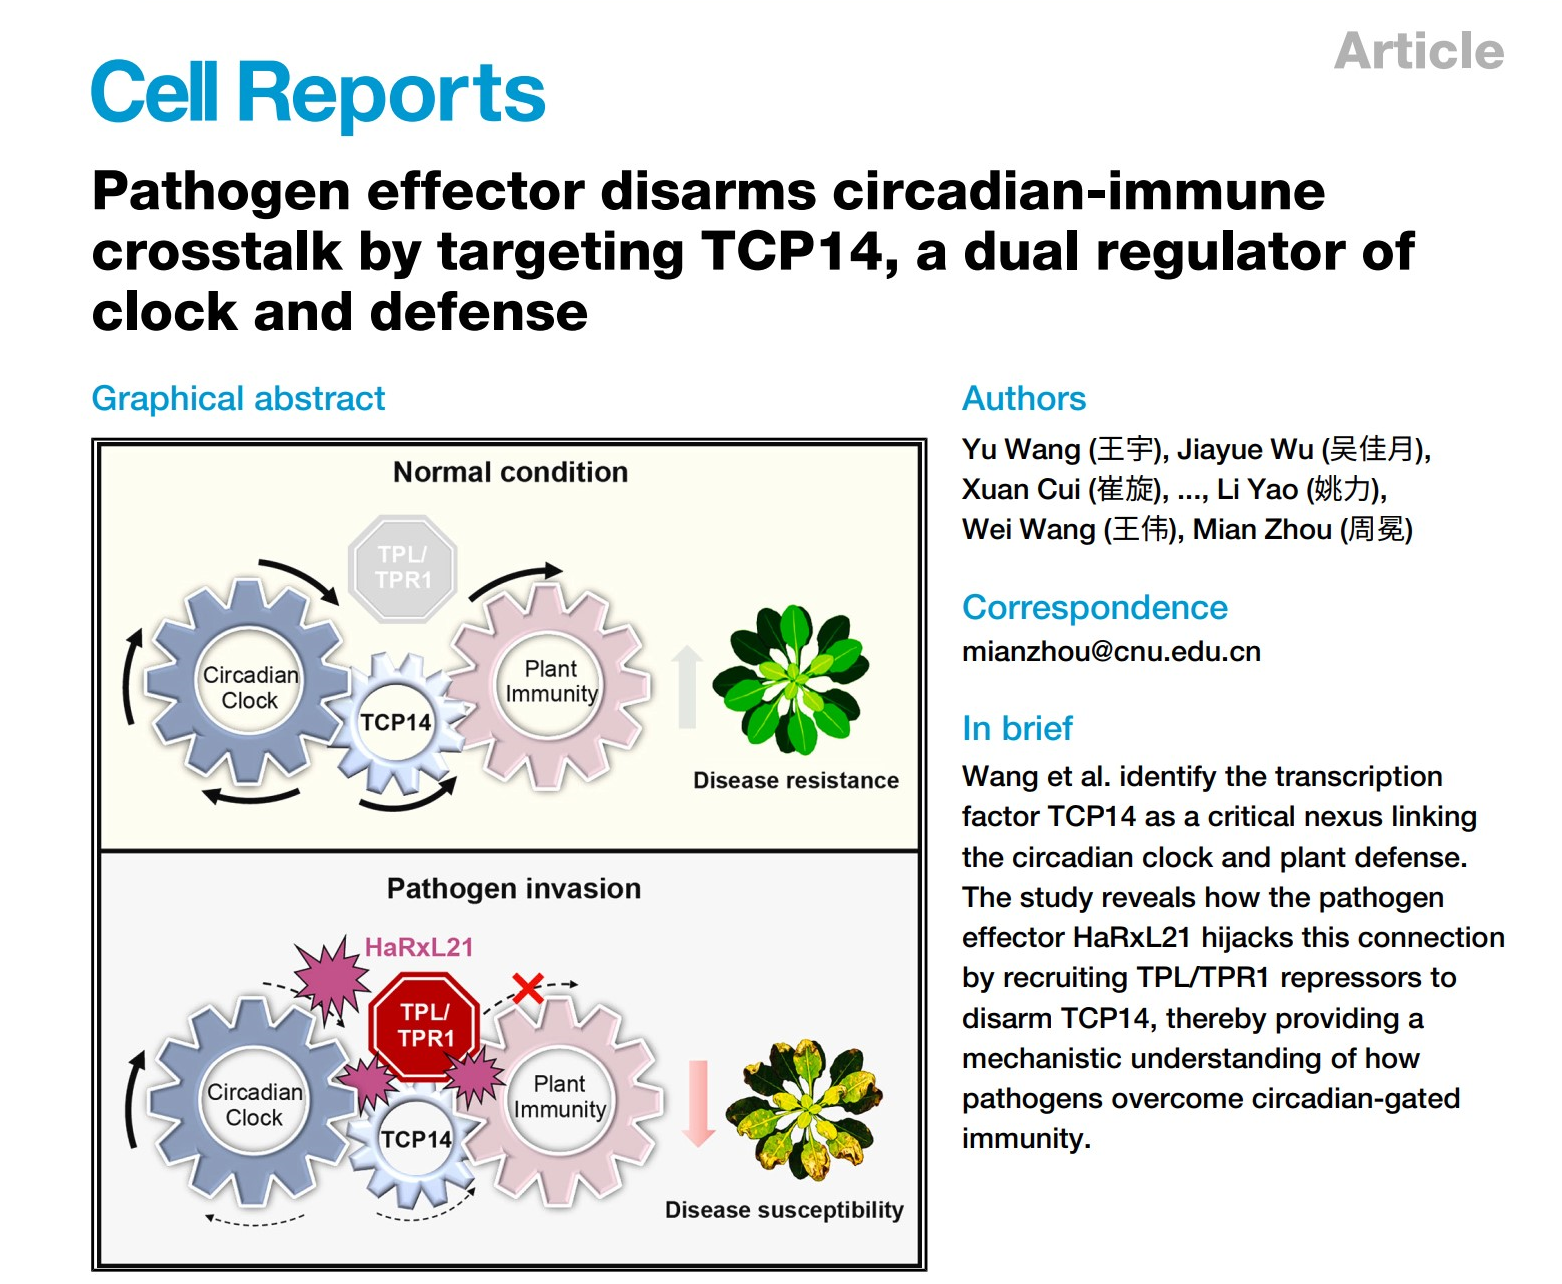
近日,首都师范大学生命科学学院周冕教授课题组在Cell Reports在线发表题为“Pathogen effector disarms circadian-immune crosstalk by targeting TCP14, a dual regulator of clock and defense” 的研究论文。该研究揭示病原菌效应子HaRxL21通过靶向植物TCP14蛋白,招募转录共抑制因子TPL/TPR1,破坏TCP14介导的生物钟与免疫互作通路,从而削弱植物的抗病能力,为解析病原菌致病机制提供了全新视角。
病原菌入侵时,会向植物细胞分泌大量“致病武器”效应子干扰其正常生理反应,且这些效应子常靶向同一植物蛋白以高效抑制植物防御。此前研究发现,TCP转录因子家族是效应子的高频靶向对象,仅TCP14就可被52个效应子靶向,但背后原因不明。有趣的是,基因节律数据库显示TCP14自身表达具有明显的昼夜节律。这表明效应子可能通过靶向TCP14干扰植物生物钟,进而突破生物钟调控的植物免疫。
研究发现,在正常情况下TCP14是连接生物钟与免疫系统的“联络员”。TCP14自身的表达呈现出严格的昼夜节律。在清晨,生物钟核心组分CCA1激活其转录;而在夜间,另一生物钟组分ZTL则通过泛素化途径将其降解,使得TCP14的蛋白含量在一天内呈现节律性振荡。另一方面,TCP14会结合CCA1、TOC1和GI等生物钟核心基因的启动子,调控生物钟的运行。更重要的是,由于TCP14对WRKY33等关键免疫基因启动子的结合能力在早晚不同,导致这些基因的表达呈现昼夜差异,从而使植物在临近清晨时具有更强的免疫能力。
然而,TCP14对上述生物钟门控免疫的正向调控作用会被病原菌破坏。研究以卵菌效应子HaRxL21为对象,发现了病原菌破坏这一精细调控的具体机制。 HaRxL21并不影响TCP14的基因转录,而是直接与TCP14蛋白结合。它阻断了TCP14与ZTL的互作,抑制了TCP14在夜间的正常降解,导致TCP14蛋白在全天的异常累积。然而TCP14的累积并未增强免疫。HaRxL21同时招募了共抑制因子TPL/TPR1。只有在HaRxL21存在的情况下,TCP14才会与TPL/TPR1形成复合体,将自身的调控功能从“激活”转变为“抑制”,从而关闭了WRKY33等免疫基因的表达。
综上,该研究明确了TCP14在生物钟介导的门控免疫中发挥的关键作用,揭示了病原菌效应子HaRxL21“精准靶向-稳定蛋白-招募共抑制因子”的三维致病策略。课题组的另一项相关研究发现,来自霜霉病卵菌的效应子HaRxL10通过靶向TCP家族成员,即生物钟蛋白CHE,干扰植物免疫和发育(Nature Communications 16:1538, 2025)。这两项研究为病原菌干扰植物生物钟-免疫互作的机制提供了直接证据,拓展了对病原菌致病性与植物防御节律性的认知,表明TCPs可能是培育抗病作物的潜在靶点。
首都师范大学生命科学学院周冕教授为论文的独立通讯作者。首都师范大学为论文的第一单位。课题组在读博士研究生王宇为论文第一作者,课题组硕士研究生吴佳月(已毕业)、刘汉光(已毕业)、范梦玲、博士后崔旋(已出站)等为共同作者。该研究得到了国家自然科学基金、北京市科技新星项目、“十四五”时期北京市属高校教师队伍高水平科研创新团队建设支持计划的资助。
原文链接:https://www.cell.com/cell-reports/fulltext/S2211-1247(26)00022-7